Mnoho enzymů se tvoří v neaktivní formě (tzv. proenzymy či zymogeny). Částečnou proteolýzou enzymu se molekula mění na aktivní formu a díky ní se zvyšuje koncentrace aktivního enzymu. Vyřazení takto aktivovaných enzymů zařídí jejich proteolytické odbourání. Interkonverze enzymů je rychlé přepínání aktivní a inaktivní formy molekuly enzymu pomocí jiného enzymu.
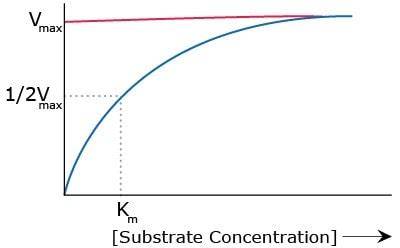
Některé enzymy se fosforylací aktivují (např. glykogenfosforyláza), jiné jsou fosforylací inhibovány (např. glykogensyntáza). Fosforylaci katalyzují enzymy patřící mezi proteinkinázy (fosfotransferázy), defosforylaci zajišťují proteinfosfatázy. Koncentrace regulačních enzymů metabolických drah je v buňce velmi nízká. Stejně tak je koncentrace substrátů mnohem nižší než je hodnota Michaelisovy konstanty (KM se shoduje s koncentrací substrátu, při níž rychlost enzymem katalyzované reakce dosahuje poloviny maximální rychlosti).
Enzymy mají určitou substrátovou specifitu. Přeměňuje-li enzym více různých substrátů, má ke každému substrátu různou afinitu. Pokud mohou stejný substrát přeměňovat např. dva různé enzymy, každý z nich má k danému substrátu jinou afinitu. Pokud je produkt reakce ihned využit, nehromadí se a reakce dále probíhá ve směru jeho další tvorby. Začne-li se nevyužitý produkt hromadit, často pak slouží jako inhibitor reakce nebo sledu reakcí vedoucích k jeho vzniku.
Změna pH může také ovlivnit aktivitu enzymu změnou disociace funkčních skupin v aktivním centru enzymu (elektrostatické interakce při vazbě substrátu) i v celé molekule enzymu (změna biologicky aktivní konformace enzymu v konformaci méně aktivní - např. Aktivitu regulačního enzymu může ovlivnit přímá vazba na nějaké látky). Pozitivní efektor slouží jako aktivátor enzymu, negativní efektor je naopak jeho inhibitorem. Nahromadění konečného produktu dané metabolické dráhy často vede k inhibici regulačního enzymu dané dráhy, na nějž se produkt váže.
(Mezi)produkt jedné metabolické dráhy může ovlivňovat aktivitu regulačního enzymu jiné, nějakým způsobem související metabolické dráhy - tzv. Meziprodukt metabolické dráhy může ovlivňovat aktivitu následného enzymu dané metabolické dráhy - tzv. Modulátory se mohou vázat na enzym buď přímo do aktivního centra (kompetitivní inhibice), nebo se vážou na jiné, tzv. allosterické místo (allosterická regulace). Isosterická modulace enzymové aktivity se týká jednoduchých enzymů, které vykazují hyperbolickou závislost mezi rychlostí reakce a koncentrací substrátu.
Jejich aktivitu ovlivňují zejména změny v koncentraci substrátu, snížení nebo zvýšení syntézy enzymu. Dále aktivitu enzymů ovlivňují inhibitory, které se vážou přímo na aktivní centrum namísto substrátu (kompetitivní inhibice). Allosterická regulace se vyskytuje u enzymů složených z více podjednotek (většina regulačních enzymů metabolických drah). Tyto enzymy vykazují sigmoidální závislost rychlosti reakce na koncentraci substrátu. Allosterické modulátory aktivity se vážou mimo aktivní centrum na jiná místa molekuly enzymu. Vazbou modulátoru se mění konformace molekuly, což se může projevit změnou afinity enzymu k substrátu a tím i rychlostí reakce.
Konečné množství aktivních forem enzymu záleží na celkovém účinku různých aktivátorů a inhibitorů vázajících se na enzym, tj. na jejich vzájemném poměru v buňce. Při zvýšení KM může být za fyziologických podmínek reakce úplně vyřazena, neboť fyziologická koncentrace substrátu leží v oblasti, kde je enzym prakticky neúčinný.
Stručné základy obecné klinické enzymologie
Enzymy slouží v živých systémech jako biokatalyzátory, tj. urychlují většinu chemických dějů v nich probíhajících. Působí tak, že snižují aktivační energii reakce. Enzymy jsou byliním povahy: část molekuly, která je pro reakci zcela nezbytná, se nazývá aktivní centrum enzymu. Některé enzymy mají navíc nebílkovinnou součást (koenzym); jako koenzymy slouží obvykle deriváty vitaminů skupiny B. Látka, jejíž přeměnu enzym katalyzuje, se nazývá substrát (S); je přeměňován na produkt (P). Enzym není pasivním účastníkem reakce, ale velice aktivně se na ní podílí. Vytváří se substrátem komplex, který je přeměněn na komplex enzym-produkt a po jeho rozštěpení se enzym uvolňuje v původní podobě, schopný katalyzovat přeměnu další molekuly substrátu.
Enzym přeměňuje jen „svůj substrát“; hovoří se o specifičnosti enzymové reakce. Ta je dvojího druhu:substrátová - enzym katalyzuje přeměnu jen jediného substrátu; funkční - enzym katalyzuje stejný typ reakce u příbuzných substrátů. Byla vytvořena vědecká desetinná klasifikace; každý z enzymů je identifikován čtyřmístným číslem. Prvé z nich enzym zařazuje do jedné z šesti tříd, další čísla pak určují enzym stále přesněji podle typu reakce, koenzymu ap., až čtvrté, poslední číslo identifikuje substrát, a tedy určuje enzym definitivně.
Příklad: laktátdehydrogenáza se správně nazývá: L-laktát: NAD+ oxidoreduktáza, EC 1.1.1.27. Množství enzymu se obvykle uvádí podle látkového množství substrátu, přeměněného na produkt za časovou jednotku. Hovoříme o enzymové aktivitě či katalytické koncentraci enzymu. Jednotkou této veličiny v SI soustavě je katal (zkratka kat).
Imunochemické stanovení enzymů se používá tehdy, vyskytuje-li se příslušný enzym v biologickém materiálu ve velmi nízké koncentraci. Metoda je založena na reakci enzymu (antigenu) se specifickou protilátkou a nestanovuje se schopnost enzymu katalyzovat určitou reakci, ale molekula enzymu jakožto antigen. Stanovuje se tedy hmotnostní koncentrace (mass concentration) enzymu a jednotkou jsou obvykle µg/l.
Faktory ovlivňující rychlost enzymové reakce
Rychlost enzymové reakce je ovlivněna teplotou, pH, aktivátory a inhibitory. Teplota: po dosažení optima (např. 37 °C) rychlost klesá tepelnou denaturací. pH-optimum většiny enzymů je mezi 7-8; některé mají jiné optimum (pepsin 1-2, alkalická fosfatáza 10). Aktivátory zahrnují ionty kovů (Ca2+, Mg2+, Zn2+). Inhibitory mohou být kompetitivní (s substrátem o aktivní místo) či non-kompetitivní (vázají se mimo aktivní centrum). Při kompetitivní inhibici vmax zůstává stejné, ale dosažení vmax se odkládá. Non-kompetitivní inhibice se potlačit nedá zvýšením substrátu a bývá reverzibilní jen odstraněním inhibitory, pokud inhibitor interaguje s volnými enzymy.
Klinické a praktické souvislosti
Koncentrace substrátu a KM určují, zda bude reakce probíhat efektivně. Při nízkých koncentracích substrátu je iniciální rychlost v0 klíčová pro určení aktivity enzymu. Využívá se kinetiky nultého řádu při saturaci substrátem; při nižší saturaci lze množství enzymu vyjádřit skrze Vmax a koncentraci enzymu. Lineweaverova-Burkova, Eisenthala-Cornishe-Bowdenova a Eadie-Hofsteeova metoda se užívají k odhadu KM a Vmax z experimentálních dat. Km nízká znamená vysokou afinitu ke substrátu a naopak. Zjištění inhibičních mechanismů usnadňuje pochopení působení léků a regulaci metabolických drah.
Allosterická regulace bývá u regulovaných enzymů důležitá; modulátory se váží na allosterické místo a mění konformaci a afinitu. Homotropní modulátor je zároveň substrátem; heterotropní modulátor a substrát jsou odlišné molekuly. Aktivace T-formy na R-formu zvyšuje aktivitu enzymu, a tedy reakční rychlost, která může vykazovat vše nebo nic (kooperativita). Množství aktivních forem enzymu je výsledkem složitého součtu aktivátorů a inhibitorů v buňce.
Biochemie | Michaelisova-Mentenova rovnice
tags: #stanovovani #koncentraci #substratu #dehydrogenas